作者:Wanhao Chen¹、Jiandong Liang¹、Xiuxiu Ren¹,²、Jiehong Zhao¹、Yanfeng Han³,*Zongqi Liang³
引用:
Chen, W.; Liang, J.; Ren, X.; Zhao, J.; Han, Y.; Liang, Z. 中国贵州类似Isaria物种的隐秘多样性. Life 2021, 11, 1093. https://doi.org/10.3390/life11101093
摘要:
许多类似Isaria的物种最近被转移到更合适的属中。然而,为了确保准确的分类鉴定,仍然需要对类似Isaria的真菌进行更稳健的分子系统发育分析。我们使用多基因系统发育分析了这些类似Isaria的菌株。在几个Isaria farinosa菌株中发现了隐秘多样性,并提出了两个新物种:Samsoniella pseudogunnii和S. pupicola。我们的结果表明,需要更多地关注不同分离株和基因型之间的隐秘种内多样性,其中一些需要转移到Samsoniella属。有趣的是,S. hepiali具有非常广泛的宿主分布,已被广泛用作药用和食用的虫草类真菌。
关键词:
隐秘多样性;种内;类似Isaria;多基因分析
1. 引言
Isaria属最初基于Isaria terrestris Fr.建立。Brown和Smith将一些描述为Isaria Pers.和Spicaria Harting的物种转移到Paecilomyces属中,这些物种具有与Paecilomyces variotii Bainier相似的分生孢子结构。de Hoog重新描述了Isaria属,并选择Isaria felina (DC.) Fr.作为选型。典型特征包括从支撑细胞或从未分化的菌丝中单独产生的齿状分生孢子细胞;大多数具有合轴;以及球形、椭圆形或亚圆柱形的分生孢子,通常具有圆形基部。Samson将Paecilomyces属分为两个部分,所有昆虫病原物种被归入Isarioidea部分。Hodge等人重新引入了Isaria属,以Isaria farinosa (Holmsk.) Fr.为模式种,并将大多数昆虫病原的中温Paecilomyces物种转移到Isaria属(Hypocreales, Clavicipitaceae)。
Kepler等人提出拒绝使用Isaria,转而支持Cordyceps,并将Isaria物种转移到Cordyceps属。Mongkolsamrit等人引入了一些类似Isaria的物种和新属Samsoniella Mongkols., Noisrip., Thanakitp., Spatafora, and Luangsa-ard。Chen等人报告了四个类似Isaria的物种:Akanthomyces araneogenus Z.Q. Liang, W.H. Chen, and Y.F. Han;Samsoniella coleopterorum W.H. Chen, Y.F. Han, and Z.Q. Liang;Samsoniella hymenopterorum W.H. Chen, Y.F. Han, and Z.Q. Liang;以及Samsoniella lepidopterorum W.H. Chen, Y.F. Han, and Z.Q. Liang。目前,许多以前归入Isaria属的物种已被转移到更合适的属中。然而,为了确保准确的分类鉴定,仍然需要对类似Isaria的真菌进行稳健的分子系统发育分析,以确保不同分离株和基因型之间的可比结果。
我们之前从中国贵州省收集了许多类似Isaria的无脊椎动物病原真菌。一些菌株基于相关ITS序列的分析显示出与Isaria farinosa (Holmsk.) Fr.的密切系统发育关系。在本研究中,我们应用多基因(ITS、LSU、RPB1、RPB2、TEF)系统发育分析重新评估了这些菌株的分类地位,以及I. farinosa不同分离株之间的隐秘多样性,并描述了新分类群以适应类似Isaria真菌的隐秘多样性。
2. 材料与方法
2.1. 真菌材料与鉴定
本研究使用的菌株是从中国贵州省不同地区采集的感染昆虫和蜘蛛标本中分离出来的,包括榕江县的达里森林、三都县的尧人山国家森林公园、印江县的梵净山、贵阳市的桐木岭和都匀市的斗篷山。菌株的分离按照Chen等人的描述进行。从标本中出现的真菌菌落被分离并在25°C下培养14天,光照/黑暗条件为12小时/12小时,按照Zou等人的协议进行。因此,获得了活体分离株。标本和分离的菌株保存在贵州大学真菌资源研究所(原贵州农业学院标本馆;代码,GZAC),贵州省贵阳市。
2.2. DNA提取、PCR扩增和核苷酸测序
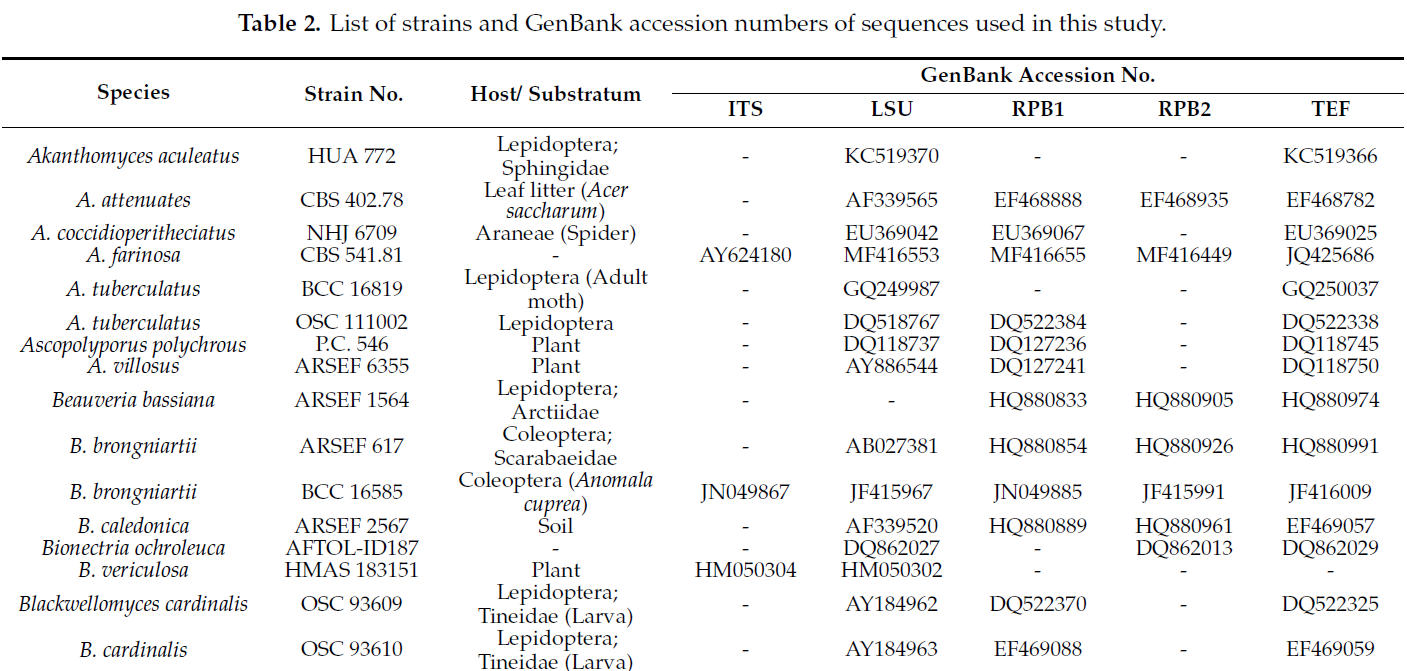
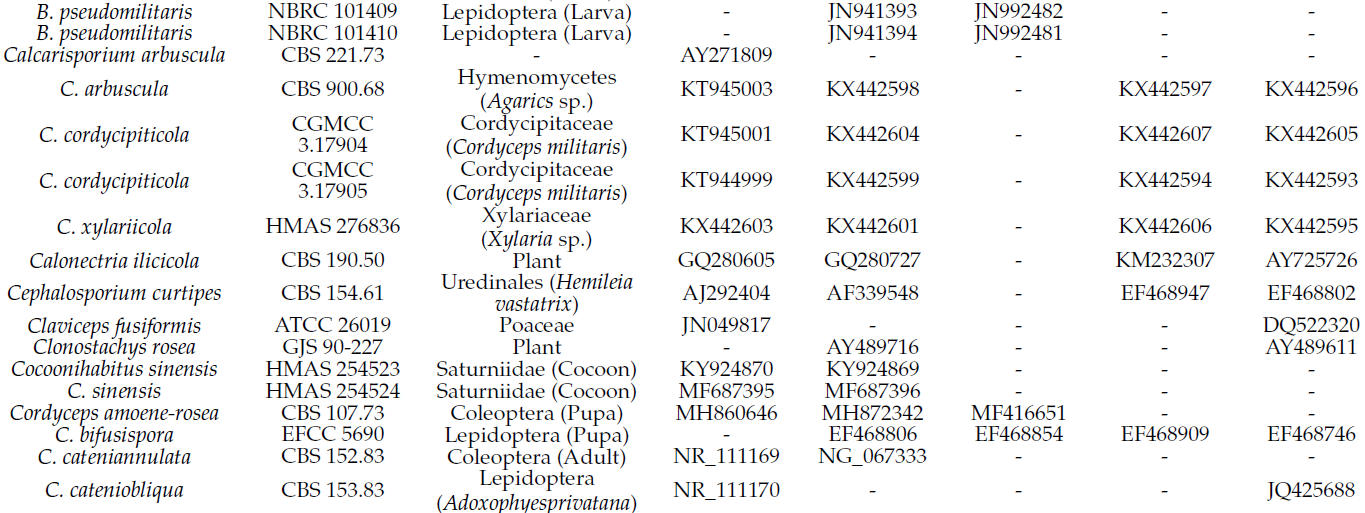
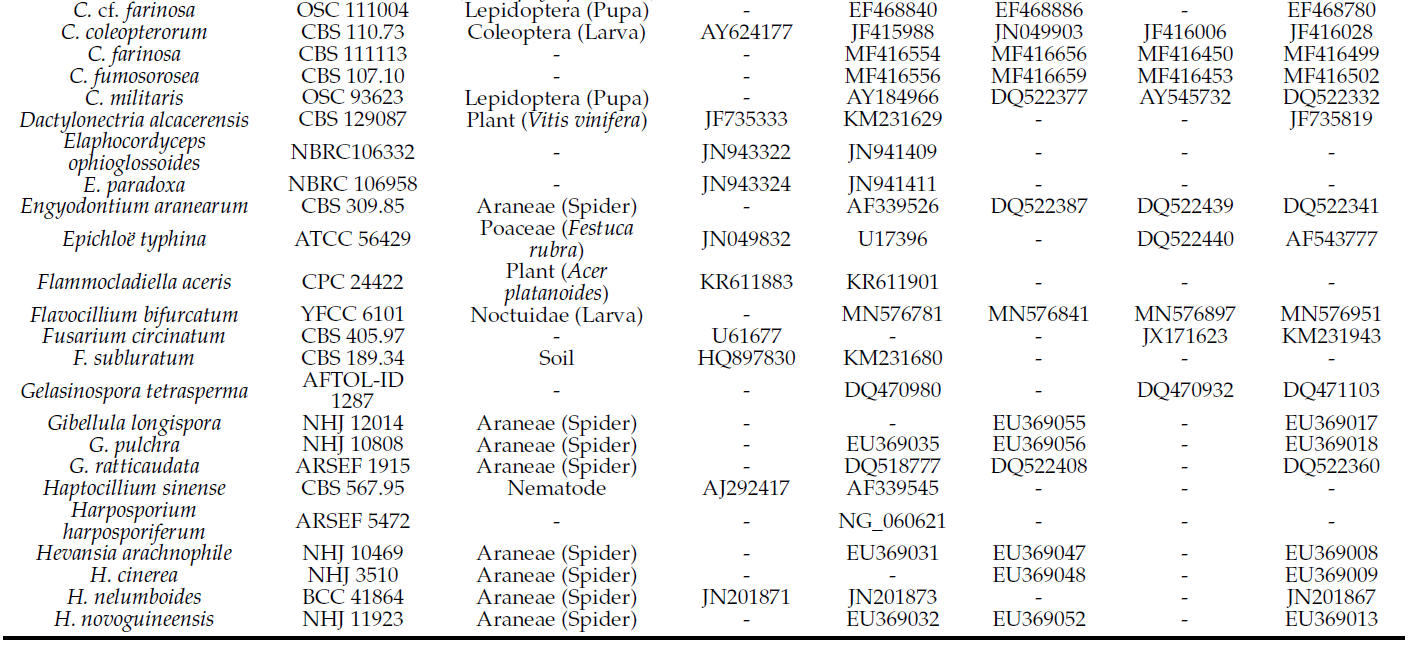
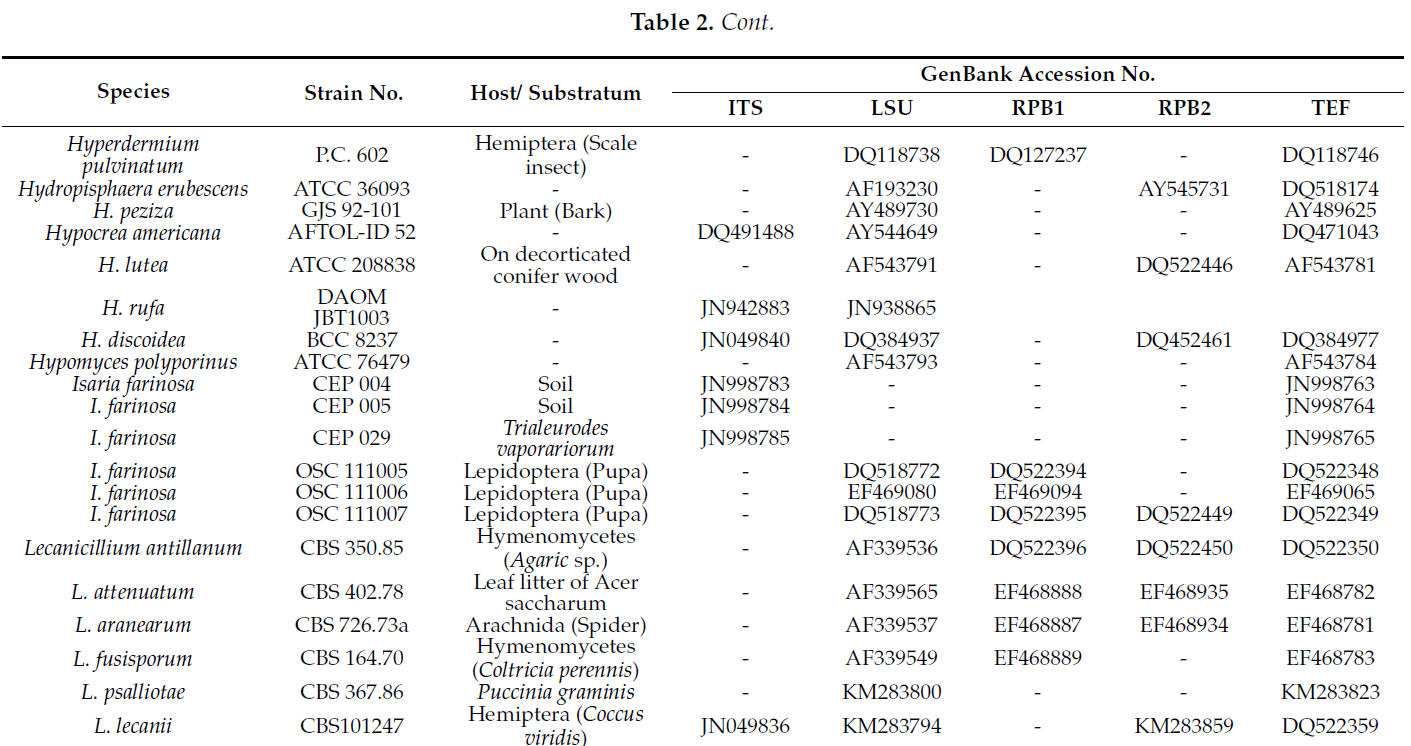
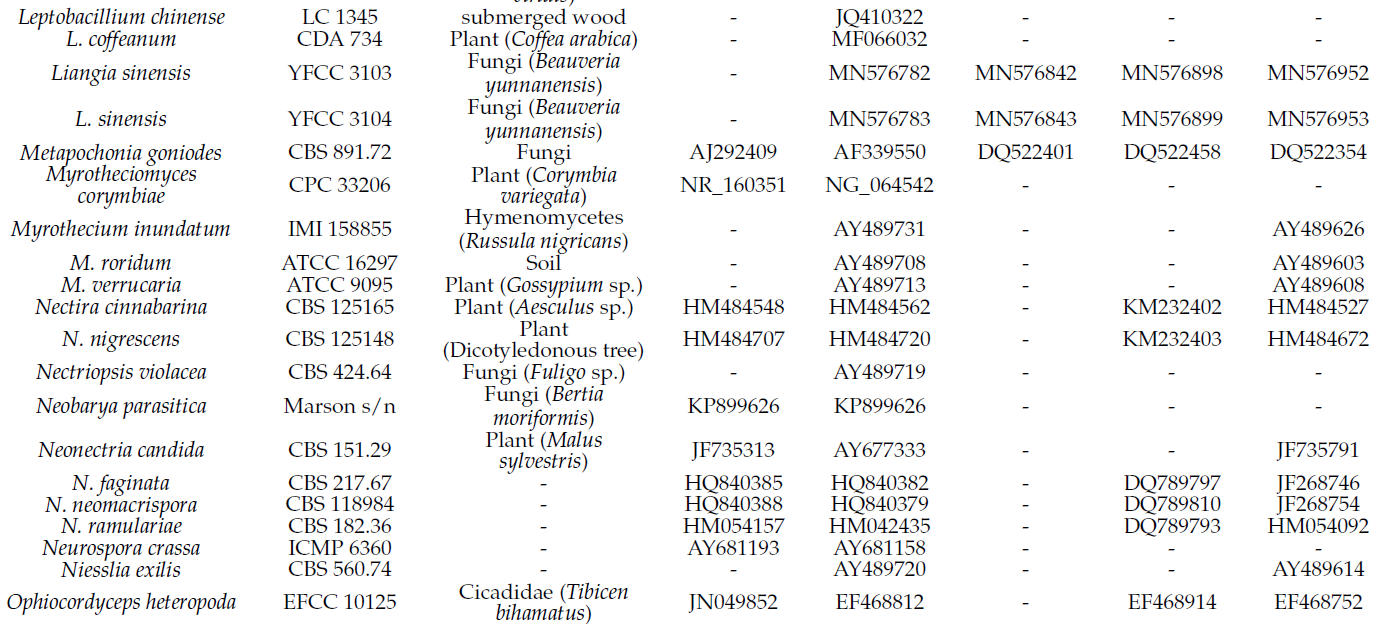
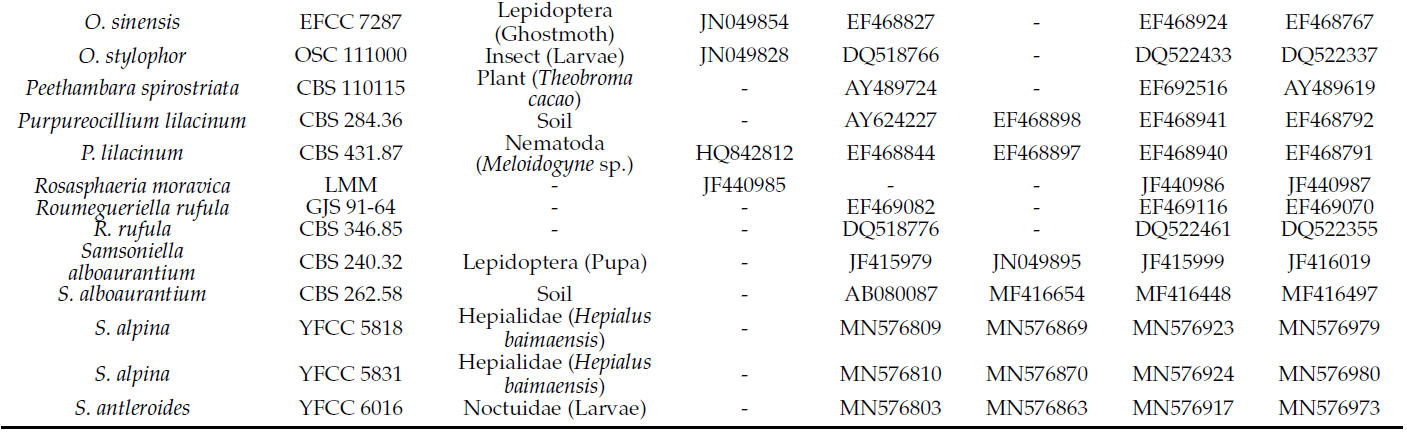
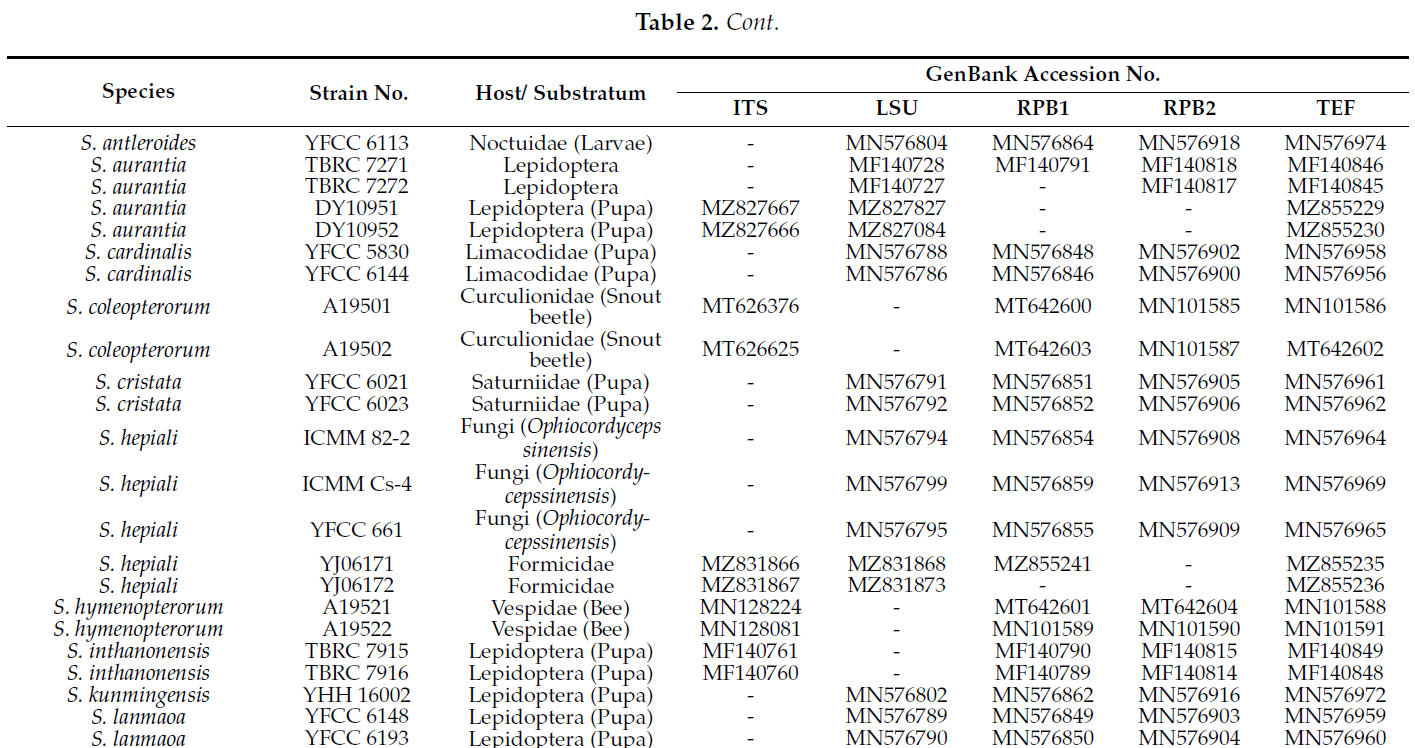
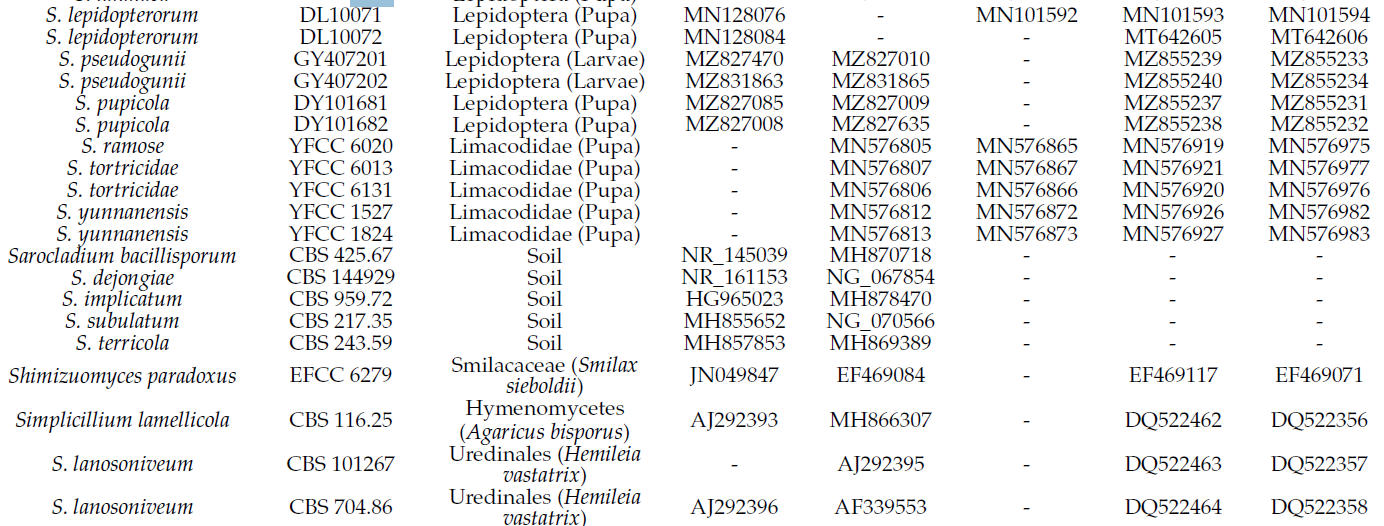
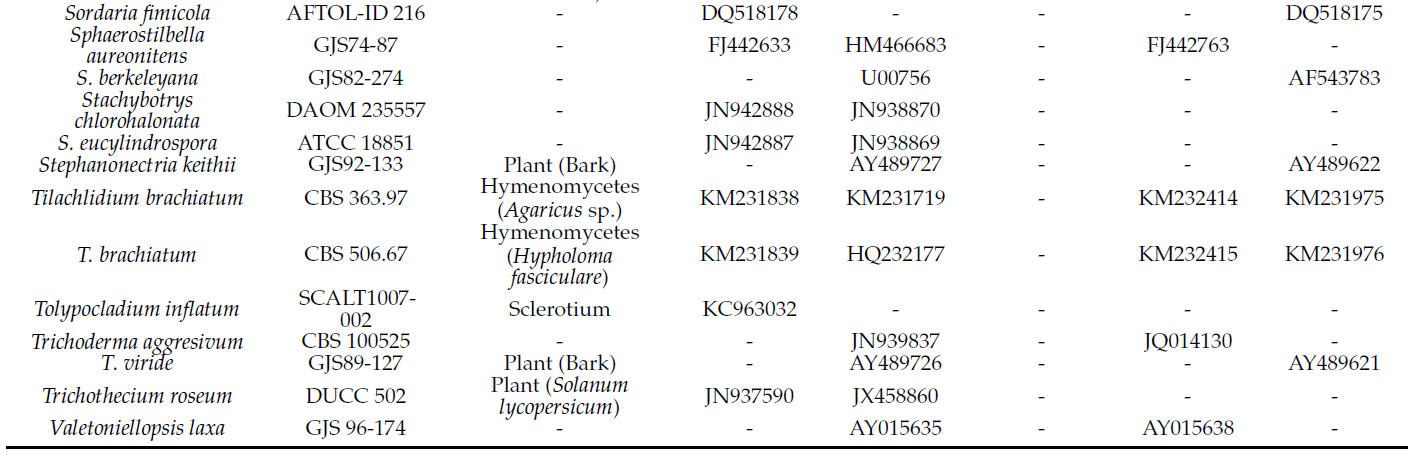
使用真菌基因组DNA提取试剂盒(DP2033,BioTeke Corporation)进行DNA提取,按照Liang等人的描述进行。提取的DNA储存在-20°C。通过PCR扩增内部转录间隔区(ITS)、大亚基核糖体RNA(LSU)基因、RNA聚合酶II最大亚基1(RPB1)、RNA聚合酶II最大亚基2(RPB2)和翻译延伸因子1α(TEF)的描述由White等人、Rakotonirainy等人、Castlebury等人和van den Brink等人分别提供。所有菌株的五个基因座的PCR反应在25 µL的总体积中进行,包含12.5 µL 2× PowerTaq PCR Master Mix(天根生物科技(北京)有限公司,中国),1 µL每种引物(10 µM),1 µL基因组DNA(20–100 ng),和9.5 µL无菌水。引物序列信息见表1。PCR产物在桑格生物科技(上海)公司进行纯化和测序。所得序列提交到GenBank(登录号见表2)。
2.3. 序列比对和系统发育分析
使用Lasergene软件(版本6.0,DNASTAR)进行DNA序列的组装和编辑。ITS、LSU、RPB1、RPB2和TEF序列从GenBank下载,基于Kepler等人、Mongkolsamrit等人、Chen等人、Wang等人和其他基于GenBank中BLAST算法搜索的选择(表2)。单个基因数据集通过MAFFT v7.037b和MEGA6进行比对和编辑。ITS、LSU、RPB1、RPB2和TEF的组合序列通过SequenceMatrix v.1.7.8进行。组合数据集(ITS+LSU+RPB2+TEF)和(ITS+LSU+RPB1+RPB2+TEF)用于确定这些菌株在Hypocreales目中的科属位置以及菌株的分类地位和I. farinosa不同分离株之间的隐秘多样性。
组合基因均使用贝叶斯推断(BI)和最大似然(ML)方法进行分析。对于BI,通过PhyloSuite软件中的ModelFinder选择贝叶斯分析的模型。使用MrBayes v.3.2生成系统发育树,使用马尔可夫链蒙特卡罗(MCMC)算法对组合序列数据集进行贝叶斯概率计算。贝叶斯分析在10,000,000代后生成20,001棵树。前4000棵树代表分析的燃烧阶段被丢弃,而剩余的16,001棵树用于计算多数规则共识树中的后验概率。分析完成后,使用Tracer v1.5程序检查每次运行以确定燃烧,确认两次运行均已收敛。ML分析使用RAxMLGUI构建。GTRGAMMA模型用于所有分区,根据RAxML手册中的建议不使用不变位点。
3. 结果
3.1. 系统发育分析
在分析1(图1)中,使用Gelasinospora tetrasperma Dowding、Neurospora crassa Shear和B.O. Dodge以及Sordaria fimicola (Roberge ex Desm.) Ces.和De Not.作为外群(以确定这些菌株在Hypocreales目中的科属位置)。在分析2(图2)中,使用Purpureocillium lilacinum (Thom) Luangsa-ard, Houbraken, Hywel-Jones, and Samson作为外群(以确定菌株的分类地位和I. farinosa不同分离株在Cordycipitaceae科中的隐秘多样性)。分析1和分析2的组合序列分别包括77和62个分类群,分别由2396(ITS,620;LSU,712;RPB2,510;和TEF,554)和3309(ITS,554;LSU,677;RPB1,533;RPB2,671;和TEF,874)个字符组成,包括间隙。
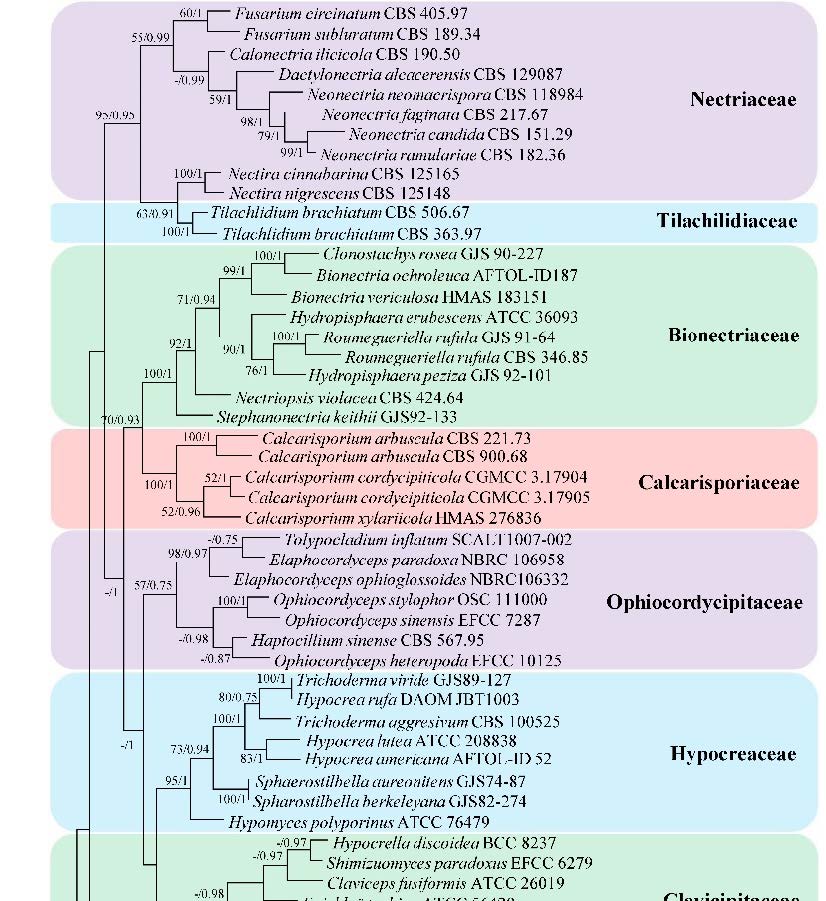
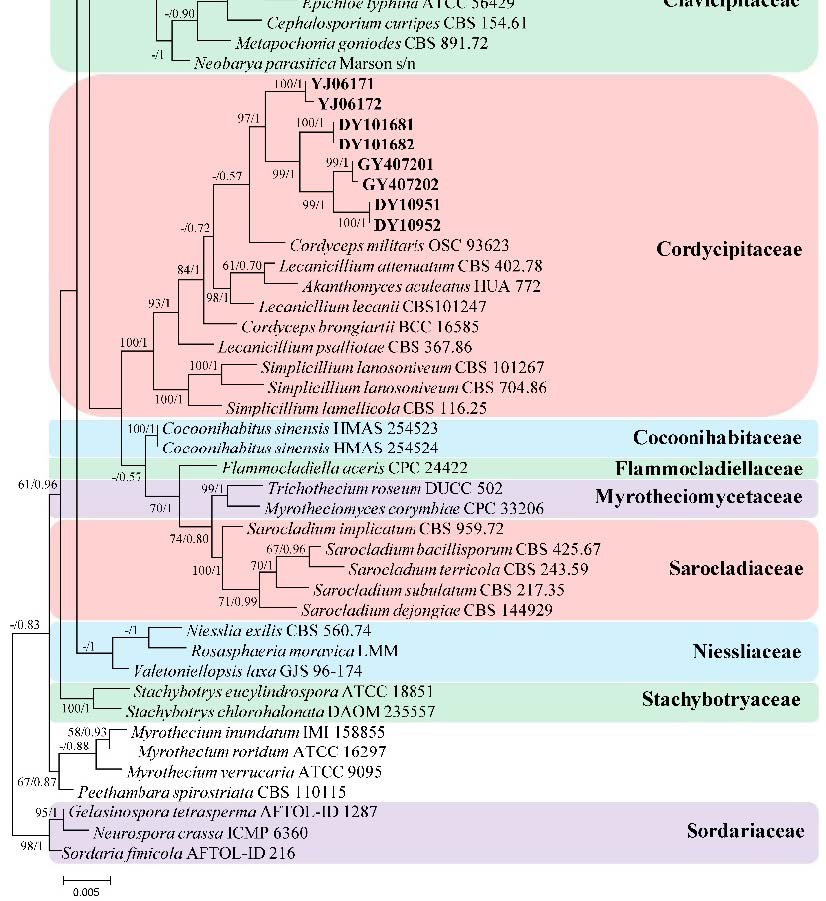
图1
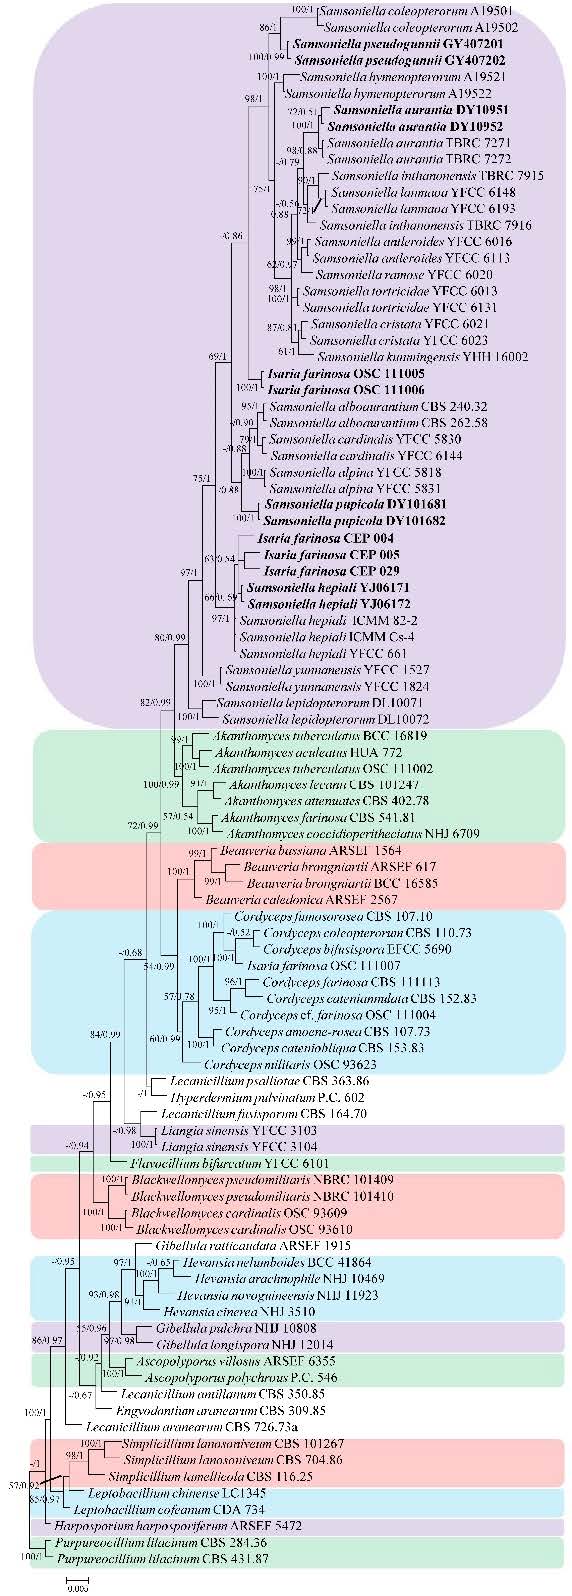
图2
分析1:BI分析选择的模型为分区ITS和LSU+RPB2的GTR+F+I+G4参数,以及分区TEF的GTR+F+G4参数。ML分析数据集的最高得分树的最终值为–37,321.078127。用于分析数据集的广义时间可逆(GTR)模型的参数估计使用以下频率:A = 0.230263,C = 0.272892,G = 0.280445,和T = 0.216401;替换率AC = 1.451341,AG = 2.441940,AT = 1.532513,CG = 1.182477,CT = 5.701598,和GT = 1.000000;以及伽马分布形状参数α = 0.381402。在系统发育树(图1)中,ML和BI树的分析在很大程度上是一致的,并且在大多数分支中得到了强有力的支持。DY10951、DY10952、DY101681、DY101682、GY407201、GY407202、YJ06171和YJ06172菌株与Cordyceps Fr.、Akanthomyces Lebert和Simplicillium W. Gams和Zare有密切关系,并聚类到Cordycipitaceae科。
分析2:BI分析选择的模型为分区ITS+LSU+RPB2+TEF的GTR+F+I+G4参数,以及分区RPB1的GTR+F+G4参数。ML分析数据集的最高得分树的最终值为–31,206.916701。用于分析数据集的广义时间可逆(GTR)模型的参数估计使用以下频率:A = 0.238319,C = 0.279080,G = 0.271674,和T = 0.210926;替换率AC = 1.120096,AG = 2.745044,AT = 0.784066,CG = 0.934312,CT = 6.322628,和GT = 1.000000;以及伽马分布形状参数α = 0.308970。在系统发育树(图2)中,ML和BI树的分析在很大程度上是一致的,并且在大多数分支中得到了强有力的支持。新菌株均聚类到Samsoniella属。GY407201和GY407202菌株与Samsoniella coleopterorum W.H. Chen, Y.F. Han, and Z.Q. Liang聚类在一个亚支中。DY10951和DY10952菌株与Samsoniella aurantia Mongkols., Noisrip., Thanakitp., Spatafora, and Luangsa-ard聚类在一个亚支中。DY101681和DY101682菌株与Samsoniella alboaurantia (G. Sm.) Mongkols., Noisrip., Thanakitp., Spatafora, and Luangsa-ard;Samsoniella alpina H. Yu, Y.B. Wang, Y. Wang, and Zhu L. Yang;以及Samsoniella cardinalis H. Yu, Y.B. Wang, Y. Wang, Q. Fan, and Zhu L. Yang有密切关系。YJ06171和YJ06172菌株与Isaria farinosa (Holmsk.) Fr.聚类在一个亚支中,并与Samsoniella hepiali (Q.T. Chen and R.Q. Dai ex R.Q. Dai, X.M. Li, A.J. Shao, Shu F. Lin, J.L. Lan, Wei H. Chen, and C.Y. Shen) H. Yu, R.Q. Dai, Y.B. Wang, Y. Wang, and Zhu L. Yang有密切关系。
3.2. 分类学
3.2.1. SamsonMycoBank No.: MB840999
词源:指与Keithomyces neogunnii相似的形态。
模式标本:中国,贵州,贵阳,桐木岭(北纬26°23',东经106°40')。寄生于鳞翅目幼虫,2019年4月1日,Wanhao Chen,GZAC GY40720(模式标本),模式活体培养物,GY407201,GY407202。
描述:在PDA培养基上,菌落直径4.1–4.3 cm,白色,由基部的毡状和棉絮状菌丝覆盖,反面黄色。匍匐菌丝光滑,有隔膜,透明,直径1.0–1.3 µm。直立的分生孢子梗通常从气生菌丝中产生。分生孢子梗单生或轮生,每轮2–9个。分生孢子梗6.8–11.0 × 2.2–2.4 µm,基部圆柱形,逐渐变细成短颈。分生孢子链状,透明,梭形,单细胞,2.8–3.2 × 1.7–2.1 µm。未观察到厚垣孢子和有性态。分生孢子梗和分生孢子的形状和大小在培养物和自然基质上相似。
已知分布:中国贵州省贵阳市桐木岭。
注释:Samsoniella pseudogunnii基于系统发育分析(图2)被鉴定为属于Samsoniella,并与S. coleopterorum有密切关系。然而,Samsoniella pseudogunnii(图3)具有更长的分生孢子梗、更大的分生孢子,并且其幼虫宿主属于鳞翅目。
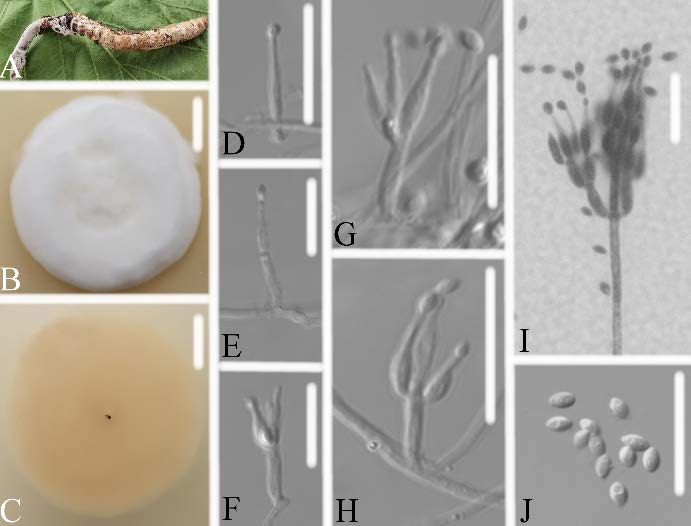
图3
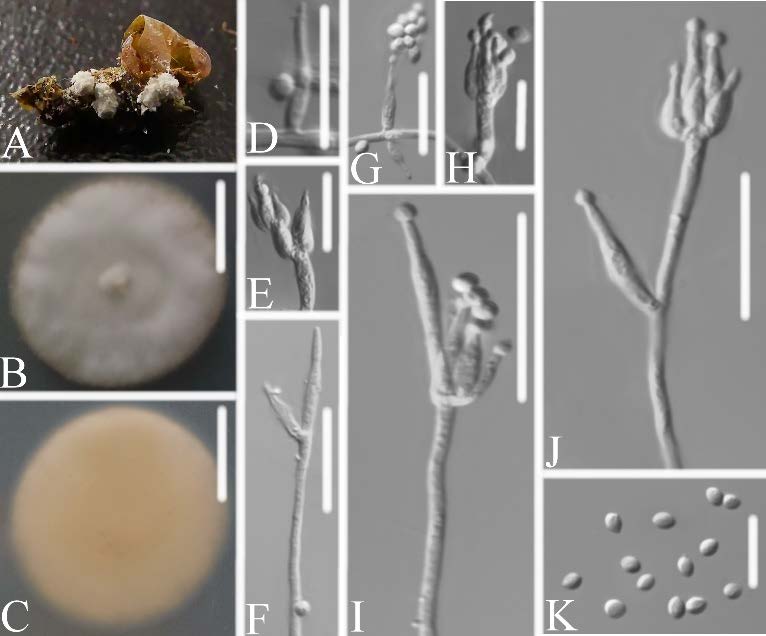
图4
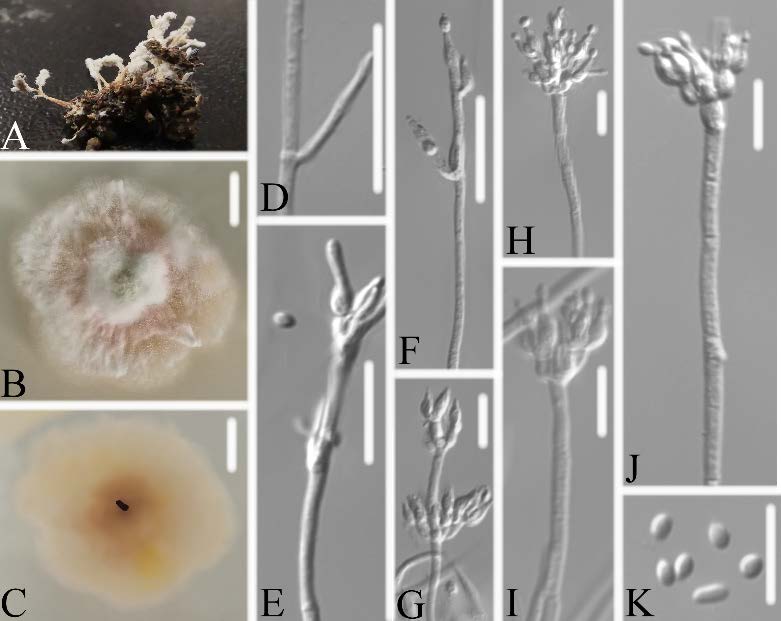
图5
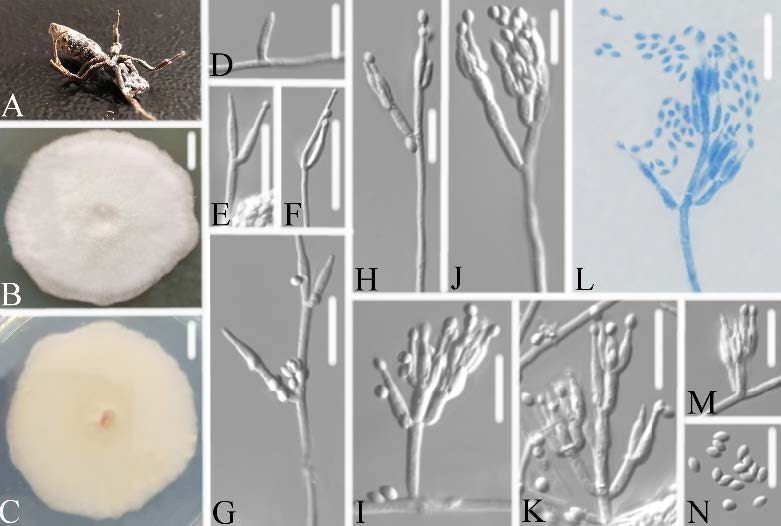
图6
3.2.2. Samsoniella pupicola W.H. Chen, Y.F. Han, J.D. Liang, and Z.Q. Liang, sp. nov.
MycoBank No.: MB841003
词源:指其寄生于蛹。
模式标本:中国,贵州,黔南布依族苗族自治州,都匀市(北纬26°21'24.71",东经107°22'48.22")。寄生于鳞翅目蛹,2019年10月1日,Wanhao Chen,GZAC DY10168(模式标本),模式活体培养物,DY101681,DY101682。
描述:在PDA培养基上,菌落直径2.3–2.4 cm,白色,由基部的毡状和棉絮状菌丝覆盖,反面黄色。匍匐菌丝光滑,有隔膜,透明,直径1.2–2.2 µm。直立的分生孢子梗通常从气生菌丝中产生。分生孢子梗单生或轮生,每轮2–9个。分生孢子梗7.0–9.2 × 2.5–3.3 µm,基部圆柱形,逐渐变细成短颈。分生孢子链状,透明,梭形,单细胞,2.5–3.3 × 2.2–2.6 µm。未观察到厚垣孢子和有性态。分生孢子梗和分生孢子的形状和大小在培养物和自然基质上相似。
已知分布:中国贵州省黔南布依族苗族自治州都匀市。
其他标本:中国,贵州,黔东南苗族侗族自治州,榕江县(北纬26°01'58.70",东经108°24'48.06"),寄生于鳞翅目蛹,2018年10月1日,W.H. Chen,GZAC DL1014。
注释:Samsoniella pupicola基于系统发育分析(图2)被鉴定为属于Samsoniella,并与S. alboaurantium、S. alpina和S. cardinalis有密切关系。然而,S. pupicola(图4)与S. alboaurantium的区别在于具有更大的梭形分生孢子,与S. alpina的区别在于具有白色菌落和梭形分生孢子,与S. cardinalis的区别在于具有更短的分生孢子梗。
3.2.3. Samsoniella aurantia Mongkols., Noisrip., Thanakitp., Spatafora, and Luangsa-ard, Mycologia 110(1): 249
描述:在PDA培养基上,菌落直径3.7–4.2 cm,白色,由基部的毡状和棉絮状菌丝覆盖,菌落中部呈淡绿色和淡粉色,反面黄色,中部呈淡棕色。匍匐菌丝光滑,有隔膜,透明,直径1.3–2.6 µm。直立的分生孢子梗通常从气生菌丝中产生。分生孢子梗单生或轮生,每轮2–10个。分生孢子梗3.6–7.7 × 1.3–1.6 µm,基部圆柱形,逐渐变细成短颈。分生孢子链状,透明,梭形,偶尔圆柱形,单细胞,2.6–3.9 × 1.7–2.2 µm。未观察到厚垣孢子和有性态。分生孢子梗和分生孢子的形状和大小在培养物和自然基质上相似。
标本:中国,贵州,黔南布依族苗族自治州,都匀市(北纬26°21'24.71",东经107°22'48.22")。寄生于鳞翅目蛹,2019年10月1日,Wanhao Chen,GZAC DY1095,活体培养物,DY10951,DY10952。
注释:DY10951和DY10952菌株基于系统发育分析(图2)被鉴定为属于Samsoniella,并与Samsoniella aurantia聚类在一个支中。DY10951和DY10952菌株(图5)的特征与S. aurantia相似,具有梭形分生孢子(2–4 × 1–2 µm)和更大的分生孢子梗(5–13 × 2–3 µm)。此外,DY10951和S. aurantia的ITS序列在554 bp内没有差异。因此,分子系统发育结果和形态学结论支持DY10951和DY10952菌株为S. aurantia。
3.2.4. Samsoniella hepiali (Q.T. Chen, and R.Q. Dai ex R.Q. Dai, X.M. Li, A.J. Shao, Shu F. Lin, J.L. Lan, Wei H. Chen, and C.Y. Shen) H. Yu, R.Q. Dai, Y.B. Wang, Y. Wang, and Zhu L. Yang, Fungal Diversity 103: 31
描述:在PDA培养基上,菌落直径5.8–5.9 cm,白色,由基部的毡状和棉絮状菌丝覆盖,反面黄色。匍匐菌丝光滑,有隔膜,透明,直径1.1–1.8 µm。直立的分生孢子梗通常从气生菌丝中产生。分生孢子梗单生或轮生,每轮2–8个。分生孢子梗6.0–7.8 × 1.5–1.8 µm,基部圆柱形,逐渐变细成短颈。分生孢子链状,透明,梭形,单细胞,2.1–2.5 × 0.9–1.6 µm。未观察到厚垣孢子和有性态。分生孢子梗和分生孢子的形状和大小在培养物和自然基质上相似。
标本:中国,贵州,铜仁市,印江县(北纬27°55'17.1",东经108°41'25.2"),寄生于蚂蚁,2019年10月1日,Wanhao Chen,GZAC YJ0617,DY1044,活体培养物,YJ06171,YJ06172。
注释:YJ06171和YJ06172菌株基于系统发育分析(图2)被鉴定为属于Samsoniella,并与Samsoniella hepiali聚类在一个支中。YJ06171和YJ06172菌株(图6)的特征与S. hepiali非常相似,具有梭形或卵形分生孢子(1.8–3.3 × 1.4–2.2 µm)和更大的分生孢子梗(3.5–13.6 × 1.3–2.1 µm)。此外,YJ06171和S. hepiali的LSU序列在677 bp内没有差异。因此,分子系统发育结果和形态学结论支持YJ06171和YJ06172菌株为S. hepiali。
4. 讨论
Isaria的分类界定最初基于形态特征。然而,Isaria与Hypocreales目中的其他属共享许多形态特征,这导致了其分类历史的动荡。D’Alessandro等人指出,用于分类Isaria属的形态特征通常无法将新分离株明确归类为物种,需要在系统发育分析中使用额外的分子标记。在本研究中,从中国贵州省收集的类似Isaria的菌株,最初通过形态特征鉴定,使用多基因(ITS、LSU、RPB1、RPB2、TEF)系统发育方法重新分析。我们提出了两个新物种:Samsoniella pseudogunnii和S. pupicola。
Isaria farinosa是一种众所周知的昆虫病原真菌,分布广泛,宿主范围广泛。Kepler等人将Isaria farinosa转移到Cordyceps属,作为C. farinosa (Holmsk.) Kepler, B. Shrestha, and Spatafora,基于CBS 111113菌株的系统发育分析。我们在本研究中分析了几个Isaria farinosa菌株。一些菌株正确地属于Samsoniella属。CEP 004、CEP 005、CEP 029、YJ06171和YJ06172菌株被鉴定为S. hepiali。DY10951和DY10952菌株被鉴定为S. aurantia。OSC 111005和OSC 111006菌株被鉴定为新物种,但在形态特征上缺乏描述。我们的结果表明,Isaria farinosa(现称为Cordyceps farinosa)中存在隐秘多样性,并表明需要更多地关注不同真菌分离株和基因型之间的隐秘种内多样性。
Samsoniella属是为典型物种S. inthanonensis Mongkolsamrit, Noisripoom, Thanakitpipattana, Spatafora, and Luangsa-ard以及另外两个物种(S. alboaurantia (G. Sm.) Mongkols., Noisrip., Thanakitp., Spatafora, and Luangsa-ard和S. aurantia Mongkols., Noisrip., Thanakitp., Spatafora, and Luangsa-ard)建立的。Samsoniella物种均具有类似Isaria的形态特征,并与Akanthomyces属有密切关系。S. alboaurantia基于两个菌株CBS 240.32和CBS 262.58建立,这两个菌株以前属于Isaria farinosa(最初命名为Paecilomyces farinosus (Holmsk.) A.H.S. Br. and G. Sm.)。Lin等人通过多基因系统发育分析修订了一些最初通过形态特征鉴定为Isaria farinosa的菌株的分类。所有菌株均被鉴定为Samsoniella hepiali (Q.T. Chen and R.Q. Dai ex R.Q. Dai, X.M. Li, A.J. Shao, Shu F. Lin, J.L. Lan, Wei H. Chen, and C.Y. Shen) H. Yu, R.Q. Dai, Y.B. Wang, Y. Wang, and Zhu L. Yang。在本研究中,YJ06171和YJ06172菌株也被鉴定为Samsoniella hepiali。我们的结果表明,更多最初命名为Isaria的分离株和基因型需要转移到Samsoniella属。
Samsoniella hepiali(也称为Paecilomyces hepiali)是从天然冬虫夏草昆虫-真菌复合体中分离出来的,并广泛用作药用和食用的虫草类真菌,创造了巨大的经济价值。Lin等人报告了从中国安徽省分离的六个Samsoniella hepiali菌株,这些菌株从叶蝉、幼虫和蝉中分离出来。CEP 004、CEP 005、CEP 029菌株来自阿根廷布宜诺斯艾利斯,从白蝇和土壤中分离出来。YJ06171和YJ06172菌株来自中国贵州省,从蚂蚁中分离出来。有趣的是,Samsoniella hepiali及其宿主在中国和阿根廷广泛分布。这一结果将帮助我们评估Samsoniella hepiali的遗传多样性程度和分布,了解其生物学和人口历史,并指导生物多样性保护计划。
作者贡献:
资源,W.C.,J.L.和X.R.;数据整理,W.C.;初稿撰写,W.C.,J.L.,X.R.;审阅和编辑,J.L.,Y.H.;审阅和编辑,J.Z.,Z.L.;资金获取,W.C.,J.L.,X.R.,J.Z.,Y.H.。所有作者均已阅读并同意最终版本的手稿。
资金:
本研究得到国家自然科学基金(31860002,32060011)、贵州省高层次创新人才培养对象(黔科合平台人才[2020]6005)、贵州省科技基金(黔科合基础[2020]1Y060)、贵州省创新科技人才团队计划(2020-5010)、贵州省科技支撑项目(黔科合支撑[2019]2776)、贵州省教育厅青年科技人才成长项目([2018]389)的资助。